
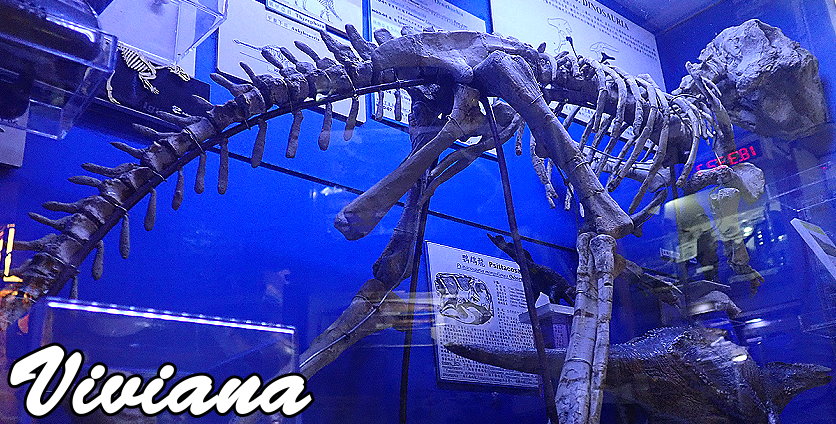
延陵科學綜合室研習組 (格物研究組前稱)把一副雜亂無章的化石進行拆解和按解剖學結構進行重組, 同時也照顧病重的貓露 (Lunus Felina), 其中精神負擔可謂百味雜陳! 2003年3月中旬終於成功把鸚鵡龍 " 慧雲娜 Viviana " 的骨格復原及拼合完成, 此時陪伴我們一起成長的貓露因乳腺癌已經病入膏盲, 確知藥石無靈了, 強撐身體和我們見證這一項成果, 但不幸於同月25日下午3時許與世長辭, 享年12歲。
幾乎完整的恐龍骨架館藏
延陵科學綜合室自1997年12月12日獲得暴龍足蹠骨的5年之後, 2003年2月本室經過精心研究鸚鵡龍的結構, 將一副由於化石裝架者錯誤裝配成"四不像恐龍", 被人忽視的化石標本重新進行處理,修繕及裝架, 歷大半個月頭的努力, 終於把生存於白堊紀前期的恐龍骨架復原, 成為繼暴龍及孔子鳥標本後最重要的自然歷史藏品。
恐龍大滅絕~自然歷史上的最大懸案
6500萬年已在地球滅絕的恐龍, 給人類研究自然歷史留下無可彌補的遺憾, 還不禁使人提出疑問: 當恐龍發展到頂極之時, 至少有數百品種, 何故在地質年代的一瞬間, 全部消失在地面之上。如今所得者, 幾乎全是殘缺的化石碎片, 恐龍帝國的覆亡, 給人類甚麼啟示呢?
地層中白堊紀 ~ 第三紀的界線是區分中生代和新生代的分界, 亦是恐龍滅絕的標志。一般認為: 恐龍在白堊紀結束時已全部消失, 至今為止并沒有在新生代地層找到任何恐龍活動的證據。
1822年英國醫生曼特爾(Mantell)首先發現巨大的牙齒化石, 外觀與現存的鬣蜥屬(Iguana)的牙齒相似, 遂以"鬣蜥之齒"命名為Iguanodon; 中文譯作禽龍。他已意識到該動物必然是龐然大物, 後來醉心研究此類己滅絕生物且收集大量的化石證據, 因過度耗費心思研究而引致家庭破碎, 最終貪病潦倒, 化石變賣給大英自然歷史博物館。1841年該館的理察.奧雲(Richard Owen)根據搜集到的更多此類化石進行更深入的研究, 并將這類型的生物命名為"恐怖的(Dino-)蜥蝪(Saur)", 中文命名為恐龍。英國的科學發現, 引致了美國科學界的恐龍化石尋金熱, 兩位古生物家馬什(Marsh, Othniel Charles)及谷蒲(Cope Edward Drinker)為發現新品種而展示十數年的競逐, 至十九世紀未期, 恐龍的族譜初步被制訂。
然而人類所發現的畢竟是強烈矽化且嚴重殘缺的生物骨架, 由於骨骼結構的相似一直被併入爬行網(Reptilia), 但根據近年土出的化石顯示, 龍盤目的多數恐龍品種似乎有熱血動物的結構特點, 恐龍的骨骼與原始鳥類的結構亦類似, 有些恐龍還披有羽毛, 這些特點又引致二十世紀中葉以後古生物學的激烈爭辯。提出"騰空理論"的約翰.奧士棠(John Ostron)認為鳥類直接來自恐龍, 故此恐龍倘未滅絕, 而是完全進化為鳥類。換言之, 現今世界仍有九千多種"恐龍"。他的理論遭到鳥類學者艾倫.費度舒亞(Alan Feduccia)的強烈反對, 費氏認為: 恐龍早己滅絕, 而鳥類與恐龍的相似性祗是趨同演化的結果而矣!
自然界結人類有關恐龍的資料亦祗是這一點兒, 恐龍在分類學上的爭議點太多, 引致連科學家也淪落於"小兒辯日"的無知地位。
一些人不惜耗盡年華致力搜索及重組恐龍的遺骸, 但他們的努力卻受另一些人為的自私及政治上破壞, 使到僅餘的恐龍資料亦受到損害。例如二次大戰中一具望齒龍化石便遭炮火摧毀; 中國的文化大革命期間峨眉龍(Omeisaurus)的化石亦被赤色風暴吞噬。
恐龍已消失在自然歷史的洪流中, 這類生物的魅力卻繫繞著人們心中, 但是藉著聊以自慰的復原形象絕不能理解恐龍的"真面目"。

恐龍起源及大滅絕成因的假設
一般認為: 三疊紀晚期 (2億2500萬年前) 的地球氣候乾旱而炎熱, 原始的巨型兩棲類動物滅絕, 槽齒類動物卻反變繁盛。牠們在這塊盤古大陸上逐漸進化, 一部分形成了最早期的恐龍。到了侏羅紀早期, 大陸塊開始解體, 海洋沿裂線擴展, 使各個板塊上形成淺海, 植物在有利條件下迅速繁衍, 繼而形成茂盛的森林及遼闊的淺海水域。此時出現了體型巨大的素食恐龍, 期後出現以素食恐龍為食的肉食類。到了白堊紀, 食肉恐龍演化為很多品系, 其中以暴龍最為凶猛。此外, 鳥盤目恐龍亦隨之興盛, 但到了白堊紀末期卻一併滅絕了。
恐龍滅絕的原因一般有下列幾種理論:
1)行星撞擊理論: 銥(Iridium)在地球上含量很少, 但在白堊紀的沉積物中發現了豐富份量, 使人猜想乃行星撞擊所留下證據。估計當時因撞擊而引起地表上濃密而蔽日的塵埃, 擋住了陽光而使大量植物枯死, 地球氣候寒冷, 素食恐龍因食物鏈中斷而滅亡; 肉食恐龍最後亦步其後塵, 當時即使能有絕少數小型的恐龍, 但不久亦難以倖免。
2)火山爆發理論: 白堊紀未期火山頻密活動帶來慢性災害, 大量的火山灰噴發出來, 經常把成群的古生物淹沒, (孔子鳥的形成可能其中之一), 大氣層逐漸昏暗, 植物枯萎, 動物亦相互獵殺而同歸滅亡。
3)哺乳類動物的出現: 到了白堊紀未期, 素食恐龍被肉食恐龍吃盡之後, 祇好相互殘殺, 同時小型哺乳類動物亦因為過度饑荒, 冒險盜取恐龍的卵, 并藉此為生。恐龍的後代受到嚴重威脅, 更有人猜測當時恐龍種族中發生了流行瘟疫, 有毒氣體漫延; 植物受污染而毒化, 最後完全滅亡。
恐龍的分類的依據
恐龍起源於迄今約二億八百萬年前的中生代時期,
經歷三疊紀、二疊紀、侏羅紀,
直至六千五萬年的白堊紀未期完全滅絕。據估計:恐龍由原始的爬行類演化而成,
牠們的習性各異,
體型由少於100厘米至3000厘米之間,
與古爬行動物不同處在於頭骨構造特殊、且有適於直立的肢骨,
其中盤骨的結構更是恐龍族內的分類依據。目前所知,
牠們自出現之後,
便按著下列兩個方向演化:
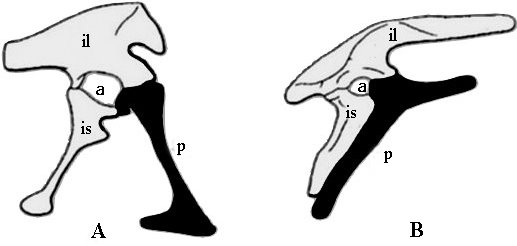
蜥盤目(Saurischia):
三放型盤骨結構, 腸骨(il)前後平伸,
恥骨(p)沿前下方伸長,
坐骨(is)沿後下方伸展,
三個骨骼形成三叉形結構。
鳥盤目(Saurischia):
四放型盤骨結構, 腸骨(il)平伸,
坐骨(is)和恥骨後部平行,
它們都沿後下方伸展,
而恥骨(p)的前部有明顯的恥骨突則向前方,
形成四叉形結構;
蜥盤目及鳥盤目的骨盤中央皆有近橢圓形的髖臼(a)。
恐龍的鱗片和皮膚
從近時於華北地區發現的恐龍顯示: 一部分蜥盤類具有和鳥類極相似的羽毛, 這種結構表明恐龍與鳥類的親緣的密切性, 但是, 并非所有恐龍都具有強烈鳥化的特徵: 從已發現的幾類鳥盤類恐龍的皮膚化石得知, 牠們有爬行類(如鱷或蜥蝪)的皮層結構。
下列的恐龍皮膚化石樣本屬於鴨嘴龍類, 約7千萬年前的白堊紀時代, 凱利克里克形成層, 美國蒙大拿州東部發現。從右下圖可以化石上端有6個彼此緊密排列在一起, 和1個零星般位於中央的的圓形鱗片鑲嵌在皮膚上, 平均直徑1厘米。由於保存條件不佳, 原來屬於皮膚的部份已完全被疏鬆的砂岩取代, 化石為非常易碎。

鴨嘴龍的皮膚化石碎片: (館藏編號:
NGD-21)
按經典動物學分類法, 恐龍類隸屬於爬行綱(Reptilia)、初龍亞綱(Archosauria)的其中兩個目, 一般認為牠們與槽齒類(Thecodontia)、翼龍類(Pterosauria)及現生的鱷類(Crocodilia)有親緣關係。但根據骨骼結構的研究顯示:恐龍有溫血動物的某些特徵, 使人懷疑牠們隸屬爬行網的正確性, 加上近年來在中國發現一系列的有羽恐龍, 以及恐龍及鳥類之間的過渡生物化石顯示牠們和鳥類之間存在密切的親緣, 一些人甚至把鳥類列入恐龍綱中, 此舉使恐龍與爬行動物的關係更為疏離。
但從化石推測: 這族群的某些成員似乎具有熱血動物的表徵, 恐龍類在分類學上的爭議為時已久, 由於大量的研究發現, 恐龍的的腰帶骨結構形成獨特站立姿態與行進方式與所有已知爬行綱動物明顯不同, 故根據美國自然歷史博物館(AMNH)及新墨西哥自然歷史博物館的Spencer G. Lucas教授引用的主要恐龍族群系統關係(1994), 把恐龍從爬行網中分出而成一綱 ~ 恐龍綱 (Dinosauria).
恐龍在動物分類學的位置現仍意見不同, 由於這族群動物的結構特殊, 應將牠們自爬行網(Reptilia)中獨立而論, 分為兩個目, 以目(order)作階元而論, 所有分類表的不變不大。每個目下分亞目(suborder), 為清晰闡述恐龍的類群, 本室特把品種細緻到下目(Infraorder)水平。但按一般分類而言: 恐龍隸屬於爬行綱的初龍亞網(Archosauria), 有進步的雙顳窩頭骨結構, 以後眶骨和鱗狀骨為界限, 該亞綱的成員除恐龍包括早已滅絕的槽齒類(Thecodontia)、翼龍類(Pterosauria), 而現生類型僅有鱷目(Crocodilia), 詳見延陵兩棲及爬行類志(Amphibia et Reptilia Ngiana)。
恐龍盤骨的恥骨各坐骨合稱髂骨, 全為朝下方延展, 而這類生物分目的依據乃按其骨盤的結構,龍盤目骨盤的恥骨向前, 坐骨向後.鳥盤目私恥骨及坐骨均向後。
恐龍綱 (DINOSAURIA)
Class Dinosauria (Owen), 1841
(1) 龍盤目(蜥盤目) Saurischia [Order Saurischia Seeley, 1888]
1a.十字龍亞目 Staurikosauria
███ 十字龍科: Staurikosauridae

南十字龍 Staurikosaurus pricei Colbert,
1970, 館藏編號: NGD-02
牙齒化石三疊紀時代的原始龍盤目恐龍, 美國新墨西哥州聖安盤地 (Sao Juan Basin) 的聖約瑟形成層出土。
1b.獸腳亞目 Theropoda [Suborder Theropoda Marsh, 1881]
1b(a).角鼻龍下目
Ceratosauria
███
虛形龍科: Coelophysidae

虛形龍 Coelophysis bauri Cope, 1889, 館藏編號: NGD-15
1b(b).猛龍下目 Tetanrae
███ 躍龍科: Allosauridae
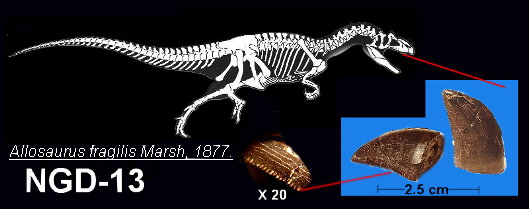
躍 龍
Allosaurus
fragilis Marsh, 1877., 館藏編號: NGD-13
發現於美國懷俄明州的巨角盤地, 莫理遜(Morrison)形成層, 侏羅紀時代(145百萬年前),牙齒化石
發掘日期:23/04/2002, 原收集者標本編號:ms-3#345。
侏羅紀最大型的肉食性恐龍。體長約11米,估計體重1.5~2噸,
為行動矯捷的凶猛捕獵者,狩獵時可能會躍進撲擊獵物,
故名。推測牠會潛伏在植叢中發動突擊, 強壯的前肢上長有3個指爪,為重要的武器,一般以中型至大型草食性恐龍為食物,無疑是侏羅紀恐龍最強的天敵。
███ 暴龍科: Tyrannosauridae


亞伯托龍 Albertosaurus
libratus (Lambe), 1914, 館藏編號: NGD-04
牙齒化石, 白堊紀時代, 美國蒙大拿州的"Two medicine"形成層出土。
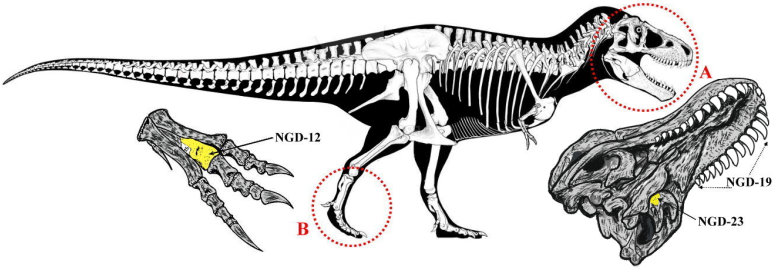
暴龍 Tyrannosaurus
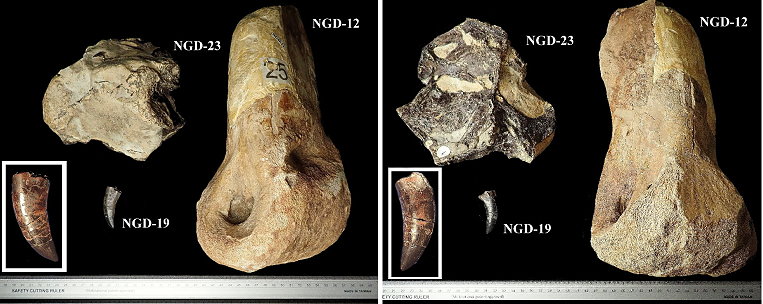
rex Osborn, 1905, 館藏編號: NGD-12
/ * NGD-19 / NGD-23, 參看暴龍志
陸生食肉動物, 據推測生存於距今1億年至6500萬年前的白堊紀晚期, 從不完全的化石資料估計:其體長約15米, 僅頭部為1.5米, 身高6米,
體重估值為6400千克。頭骨特別笨重, 高而側扁, 牙齒極發達, 前上頜骨有4齒; 上頜骨12~13齒; 下頜骨14~15齒。頸骨短,有頸椎9~10個, 背椎13~14個, 荐椎5個。肩帶退化, 前肢細弱, 僅有兩指。但腰帶卻很發達, 後肢粗大, 3個趾上生有大爪。頭骨、牙齒及前後肢的特點都和這類恐龍的食性有關。暴龍可能生活於丘陵地區, 行動迅速, 以各種植食性爬行動物為食物, 由於大型的植食蜥腳類恐龍的大量滅絕, 加上白堊紀未期地球氣候的異變, 凶猛的暴龍及其他恐龍也完全在自然史上消失 !
* 2025年格物研究對暴龍標本作重新研究,把NGD-19 牙齒化石剔出暴龍的可能性,根據其出土地點和形態學進行詳細分析證實為侏儒暴龍(矮暴龍) ( Nanotyrannus lancensis Gilmore, 1946 )。
■延陵動物志(恐龍)附錄:
暴龍(暴龍 Tyrannosaurus
rex Osborn, 1905)
右足中蹠骨(metatarsal bone)化石標本: NGD-12 ~ "延陵暴君龍 NG-REX" 長: 28厘米; 闊:15.25厘米; 重量: 4千克。發現於美國南達卡州(South Dakota,USA), Hell Creek形成地層中。
牙齒化石標本: NGD-19 ~ "暴龍亞Lue" 牙尖缺失, 根據修繕工作後推測長5厘米, 缺損部分約1.3厘米。發現於美國蒙大拿州東部, Hell Creek形成地層中。此標本為暴龍的牙齒化石, 本室成員自文本資料對它進行研究之時, 病入膏肓的貓露仍在我們研究桌上歇息, 當時化石正從美國付運中, 可惜貓露等不及它的到臨, 便黯然與世長辭 。本室為紀念這位特別的研究伴侶, 決定把這個最新收集的暴龍牙齒化石命名為為暴龍亞Lue, 聊表追思!
左側翼骨( left ectopterygoid )內側下角位化石殘片標本: NGD-23 ~ 長: 16厘米; 闊:15厘米; 重量:1.225千克。這個標本一直存放的庫藏中, 僅知道為暴龍化石殘片, 但對其準確位置卻一無所知, 近時有賴於美國的學術網站, 格物研究組根據其發布暴龍頭骨解剖的分區逐一進行鑑別, 最終得到的結果( Owen, VI, VII, 2022)。
███ 奔龍科: Dromaeosauridae


奔龍 Dramaeosaurus sp. , 館藏編號: NGD-09
牙齒化石,白堊紀時代晚期, 非洲摩洛哥的撤哈拉出土。
███ 棘龍科: Spinosauridae

棘龍 Spinosaurus aegypticus Stromer, 1915,
館藏編號: NGD-10
牙齒化石, 白堊紀時代晚期, 非洲摩洛哥的撤哈拉出土。
███ 望齒龍科: Carcharodontosauridae

望齒龍 Carcharodontosaurus
saharicus Deperet & Savornin, 1927, 館藏編號: NGD-11
牙齒化石, 白堊紀時代晚期, 非洲摩洛哥的撤哈拉出土。
███ 鋸齒龍科: Troodontidae

蜥鳥龍
Saurornitholestes langstoni
Sues,
1978, 館藏編號: NGD-20
牙齒化石, 白堊紀末期, 發現於美國蒙大拿州東部。
1b(c). 慢龍下目 Segnosauria
███ 慢龍科: Segnosauridae (Therizinosauridae)

慢龍 Segnosaurus sp.,
館藏編號: NGD-16
完整卵化石, 華北地區出土。
1c. 蜥腳亞目
Sauropoda, Marsh, 1878
1c(a).蜥腳下目 Sauropodamorpha, Huene, 1932
███ 梁龍科: Diplodocidae

雷龍
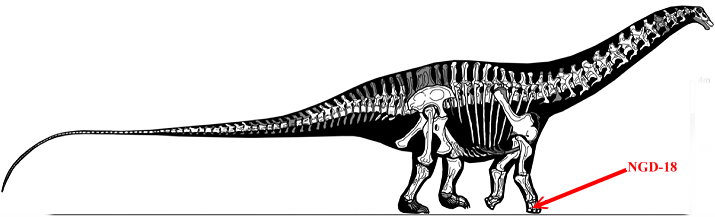
Apatosaurus louisae Holland, 1915, 館藏編號: NGD-18
右足第四趾的趾頭骨,
侏羅紀時代(1億4500萬年前)莫理桑形成層,
美國懷俄明州大角盤地出土。
發掘日期:
1999年8月2日,
原收集者的標本編號:
ms-1#153
生活於距今1億5600萬至1億5000萬年前的侏羅紀未期的極大型四足行走的群居性恐龍,
體長可達2100厘米,
估計體重約2500千克,
素食性,
以蕨類及其他植物的葉片為食。
頭部很小,
扁形,顎上長有栓狀牙齒,
頸部幼長,
肌肉可能十分發達,
能把頭伸至很高或俯首近地面以方便進食巨型蕨類植物的葉片,
位置體軀呈橢圓柱形,
佔體重的絕大部分。四肢呈柱狀,
足上長有五個很短的趾,
前三趾的趾端有爪,
後二趾祗有趾鈍趾頭,
尾鞭狀,機動性強,
推測其行走時會將之翹起,
遇到敵者時也會直立身體,把尾監得很高以示警,
遇襲時可能還以尾巴撻擊敵人。靈活有力的尾部及碩大的體軀成為這種恐龍賴以自衛的優勢。
但由於食量大,
自衛能力較差,
牠生存了約600萬年便滅絕了。
化石發現於美國的科羅拉多州、猶他州、奧克拉荷馬州、懷俄明州、加州及墨西哥。
(2) 鳥盤目 Ornithischia [Order Ornithischia Seeley, 1887]
2a.法布龍亞目 Fabrosauria

瑞維托龍 Revueltosaurus
callenderi Hunt, 1989, 館藏編號: NGD-06
牙齒化石, 三疊紀晚期, 美國新墨西哥州的"Bull
Canyon"形成層出土
直至最近為止, 牙齒化石僅於新墨西哥州發現,
故此人們對牠的認識不多, 按發現的地層推敲,
牠屬於三疊紀時代的原始素食性恐龍,
而且牠與侏羅紀至白堊紀時代的素食恐龍并無親緣關係,
從極為有限化石資料估計牠體長約為200厘米, 與法布龍科(Fabrosauridae)很接近, 分類學位置仍待研究。
2b.鳥腳亞目 Ornithopoda [Suborder ornithopoda Marsh, 1871]

愛德蒙托龍 Edmontosaurus
annectens (Cope), 1892, 館藏編號: NGD-01
牙齒及鍵骨化石,
白堊紀時代, 牙齒: 美國南達科他州"Hell
Creek"形成層; 鍵骨:美國懷俄明州的"Lance Creek"形成層出土。

禽 龍 Iguanodon Iguanodon bernissartensis
Boulenger, 1881, 館藏編號: NGD-05
尾椎化石,白堊紀中期, 英國的威爾登黏土形成層(Wealden
Clay Formation)出土
估計體長約900厘米, 體重4500千克, 起源於白堊紀早期,
至中期完全滅絕的大型素食性恐龍, 主,要以兩足或四肢行走。嘴部角質,
喙上無齒, 頰齒有非常特別的脊狀突, 藉顎部的滑動嚼食植物,
因具有如鬚蜥(Iguana)的牙齒而得名。前趾有5指,
拇指特化為尖刺, 為最重要的自衛武器。後肢有3趾,
為主要的動力來源及支撐身體的主要部位。可能以木賊、蕨類及原始的顯花植物為主食。化石首先在1825年於英國發現,
其後證實比利時、德國以至美國的南達科他州也有分布。
2c. 頭飾亞目 Marginocephaila
[角龍亞目 Suborder Ceratopsia Marsh,
1890]
2c(a).厚頭龍下目
Pachycephalosauria (腫頭龍亞目 Suborder Pachycephalosauria
Osmolska et Maryansky, 1976)

厚頭龍
Pachycephalosaur Pachycephalosaurus wyomingensis
(Gilmore), 1931,
館藏編號: NGD-17
頭骨碎塊, 白堊紀時代, 美國蒙大拿州東部凱里克利克形成層。
2c(b).角龍下目 Ceratopsia
蒙古鸚鵡龍
Psittacosaurus
mongoliensis Osborn, 1923,
館藏編號: NGD-14
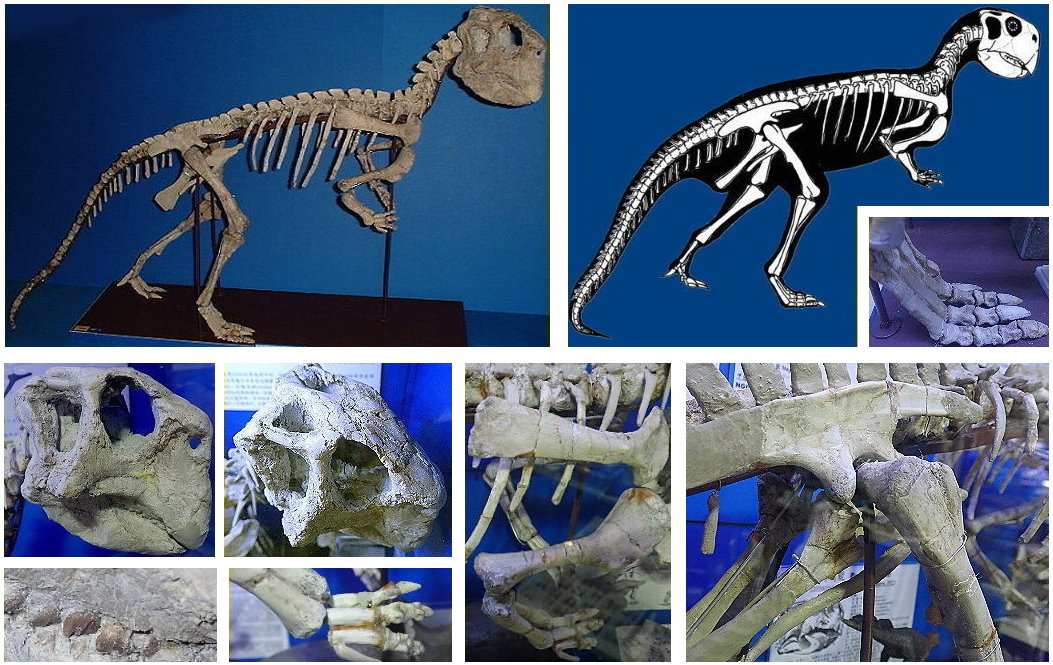
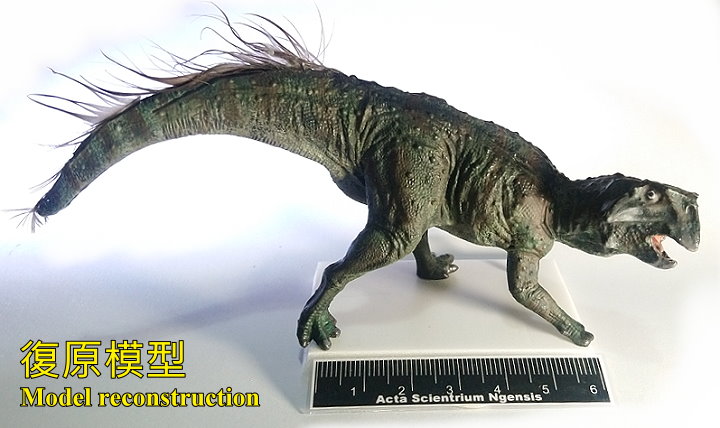
生存於距今1億1300萬年前至900萬年前的白堊紀中期, 基本完整的代石, 華北地區出土。
體長由80厘米至200厘米之間, 大多數出土化石個體約100厘米, 以兩足行走的小型草食恐龍。 頭部較短, 上頜及下頜每側各有7~9顆三葉狀頰齒,
齒冠中稜前各有2~4個小脊; 牙齒質地光滑, 齒冠較低。 吻部有彎曲的角質巨形喙, 形態和功能和鸚鵡的喙部極為相似, 因而得名。 顴骨向兩側突出, 外鼻孔小,
前額位於鼻骨之下, 顳下窗寬闊, 頸部較短, 頸椎6~9個; 脊椎13~16個, 荐椎5~7個, 腸骨細長且略呈彎曲狀, 坐骨很發達, 身體長而較為肥厚,
前肢臂長, 有4指, 第4指特別短小, 第5指已消失。前肢結構極為適於握持物樹枝, 後肢尾較短, 有4趾, 尾部較短。鸚鵡龍生活於低窪的湖泊或河岸地區,
以岸邊的柔嫩多汁植物為主食, 牠有堅固的角質喙切斷植枝, 再用後齒咀嚼并吞食。
從分類上, 與其他角龍類物種的親緣較近, 但構造明顯較為原始, 而且出現在地球的歷史較為遠古,
故此認為鸚鵡龍是有角恐龍的祖先。牠未發展出角龍獨特的尖狀角刺及骨質頸盾以作護衛, 估計受到襲擊時祗能以逃躲以避難, 但當大量的肉食恐龍出現,
因不適應環境而趨於滅絕, 牠存在了約400萬年, 按恐龍的自然歷史而言, 鸚鵡龍由出現至絕種所經歷的時間并不長, 但較進化角龍後裔能繼續生存下來,
并與其他恐龍共同稱霸於地球的陸地上, 直至白堊紀結束為止。
僅發現於亞洲大陸中部, 包括發現於中國及蒙古的蒙古鸚鵡龍 (Psittacosaurus
mongoliensis Osborn, 1923); 中國的中國鸚鵡龍 (Psittacosaurus
sinensis Young, 1953)和梅勒營鸚鵡龍 (Psittacosaurus meileyingensis
Sereno et. al., 1988) 及泰國的一種, 目前所知共有9種。
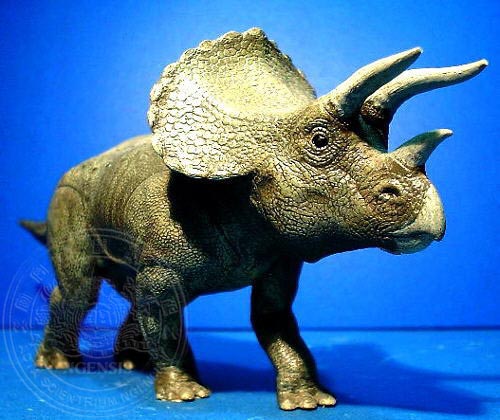

三角龍 Triceratops horridus
Marsh, 1890, 館藏編號:
NGD-03
頭部的頸盾化石, 白堊紀時代, 美國蒙大拿州Hell Creek形成層出土。
2d.裝甲亞目 Thyrephora [本亞目亦分為劍龍亞目Suborder Stegosauria Marsh, 1880 及 甲龍亞目Suborder Ankylosauria Osborn, 1923]
2d(a). 劍龍下目 Stegosauria
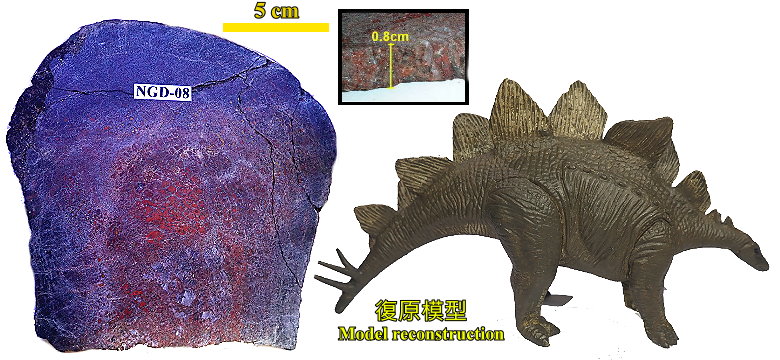
狹臉劍龍 Stegosaurus stenops Marsh, 1887, 館藏編號: NGD-08
骨的切片化石, 侏羅紀時代, 美國猶他州莫拉桑形成層出土。
2d(b). 甲龍下目 Ankylosauria

甲 龍
Ankylosaurus magniventris Brown, 1908, 館藏編號: NGD-07
牙齒化石,白堊紀時代, 美國蒙大拿州出土。
主要參考文獻
[1]《新世紀恐龍大百科》大衛.蘭伯特著,吳春諭譯, 貓頭鷹出版社,1997年5月第四版
[2]楊安峰編著《脊椎動物學》修訂本. 北京大學出版社,1994
[2]《中國大百科全書》生物學 I ~ III, 中國大百科全書出版社,北京.上海
[3] 董枝明/程延年著 《恐龍大地The Land of the Dragon》中英合版 ,1996年初版
[4]口袋圖書館《恐龍》謝宜英譯, 貓頭鷹出版社,1998年1月
[5]The Natural Canvas, Spring/Summer'97 Catalog
[6]趙伐編《恐龍滅絕》生命進化的謎團. 重慶出版社,1995/05.
 |
本網頁中所有圖片及文本受延陵科學綜合室版權保障
All images and text on this page are
copyright protected © Acta Scientrium Ngensis